علم الأحياء الخلوي الأحادي الحديث يؤكد ويُعقّد استعارة المشهد التخلّقي لـ Waddington
تُقدم التطورات التجريبية الأخيرة في تحديد التوصيف الخلوي دعماً تجريبياً للنموذج المفاهيمي الذي وضعه C.H. Waddington لتمايز الخلايا في خمسينيات القرن الماضي مع الكشف عن تعقيد غير متوقع.
The Global Wire Newsroom ·
Link preview · horizonglobalnews.com
علم الأحياء الخلوي الأحادي الحديث يؤكد ويُعقّد استعارة المشهد التخلّقي لـ Waddington
تُقدم التطورات التجريبية الأخيرة في تحديد التوصيف الخلوي دعماً تجريبياً للنموذج المفاهيمي الذي وضعه C.H. Waddington لتمايز الخلايا في خمسينيات القرن الماضي مع الكشف عن تعقيد غير متوقع.
تُرجم هذا المقال آليًا بواسطة الذكاء الاصطناعي في غرفة أخبارنا عن الأصل الإنجليزي. اقرأ بالإنجليزية
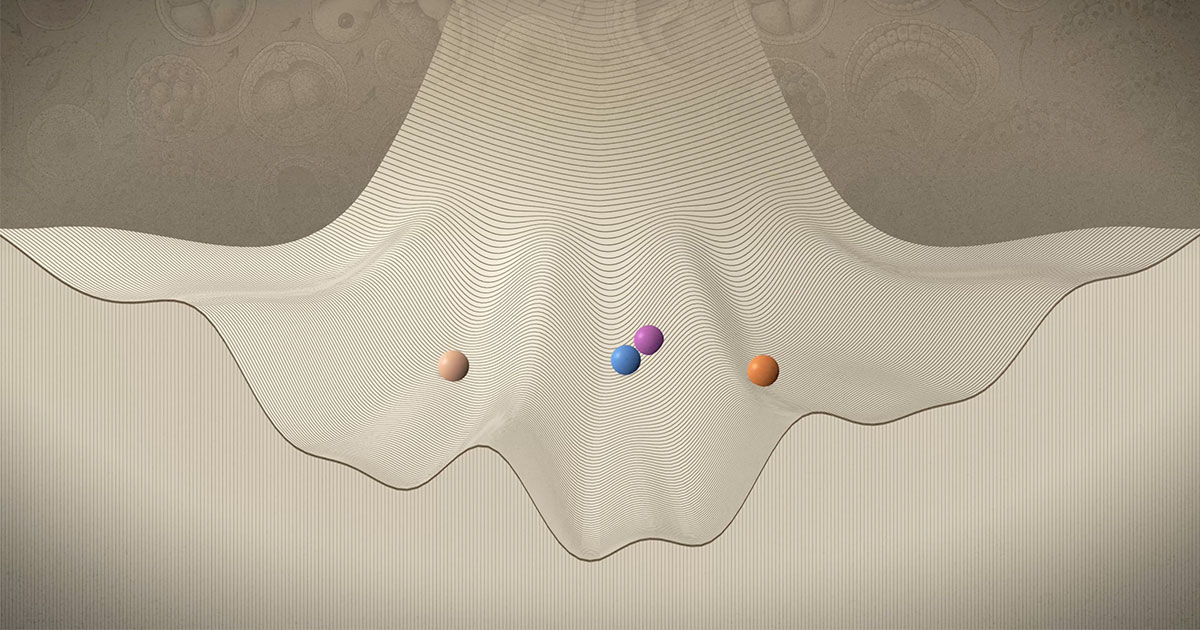
تُحول التطورات الحديثة في تكنولوجيا الخلايا الأحادية والنمذجة الرياضية واحدة من أكثر الاستعارات استدامة في العلوم البيولوجية إلى واقع فيزيائي كمي. لأكثر من سبعة عقود، اعتمد علماء أحياء التطور على إطار مفاهيمي طرحه العالم البريطاني Conrad Hal Waddington: خلية جذعية جنينية تُصوَّر ككرة تتدحرج على مشهد مائل ومتموج، وتختار أودية متباعدة كلما تخصصت في أنواع أنسجة معينة. وتعمل الأبحاث التجريبية الأخيرة حالياً على قياس ورسم الخصائص الرياضية لهذه التضاريس المفاهيمية مباشرة، ما يؤكد الحدس الرؤيوي لـ Waddington ويكشف في الوقت نفسه عن أن التطور الخلوي أكثر مرونة وديناميكية مما كان مُتوقعاً في الأصل، وفقاً لما أوردته مجلة Quanta Magazine.
## حقائق رئيسية - قدم عالم أحياء التطور البريطاني C.H. Waddington مفهوم "المشهد التخلّقي" (epigenetic landscape) في منتصف القرن العشرين لشرح كيفية تمايز الخلايا المتطابقة جينياً إلى أنواع خلايا متخصصة. - تُصوّر الاستعارة الكلاسيكية الخلية ككرة تتدحرج على تلة تضم أودية متفرعة، حيث يمثل كل مسار مصيراً خلوياً مستقلاً. - يتيح تسلسل الحمض النووي الريبي (scRNA-seq) للخلية الأحادية الحديث وعلم الترانسكريبتوميكس عالي الأبعاد للعلماء رسم خرائط لمساحات الحالات الجينية الحقيقية التي تعكس التضاريس المفاهيمية لـ Waddington. - تُظهر النتائج التجريبية الأخيرة أن المسارات الخلوية أقل جموداً مما افترضه Waddington، مع قدرة الخلايا على القفز عبر الحواف التضاريسية أو الصعود إلى الأعلى مجدداً. - وفقاً لما أوردته Quanta Magazine، يجمع الباحثون بين الميكانيكا الإحصائية غير التوازنية والتوصيف الجيني لتحويل استعارة Waddington البصرية إلى معادلات رياضية تنبؤية.
## ماذا حدث تسارعت عملية انتقال نموذج Waddington المفاهيمي إلى علم تجريبي مع توافق الأدوات الحوسبية مع دقة الأجهزة المختبرية الحديثة. في الصياغة الأصلية لـ Waddington، تُخيّل سطح المشهد كنتيجة لآليات جينية أعمق: تحت التضاريس المتموجة، مثلت شبكة من الأوتاد المغروسة في الأرض الجينات الفردية، المربوطة بحبال مرنة مشدودة بالمشهد أعلاها. ومع تغير النشاط الجيني، أدى الشد الواقع على الحبال إلى تغيير تضاريس الأودية والحواف، مما وجه الخلية عبر مسارات تطويرية محددة.
وفقاً لما أوردته Quanta Magazine، يقوم علماء الأنظمة البيولوجية والفيزيائيون المعاصرون الآن ببناء هذه السطوح باستخدام قياسات مباشرة للخلايا الحية. ومن خلال استخدام تسلسل الـ RNA للخلية الأحادية، يمكن للباحثين في المختبرات قياس مستويات التعبير لآلاف الجينات داخل الخلايا الفردية بالتزامن. وعندما تحلل الخوارزميات الحوسبية الآلاف من هذه اللقطات الخلوية المجمعة عبر مراحل تطويرية مختلفة، فإنها تبني مساحات حالة عالية الأبعاد. وتعمل التقنيات الرياضية مثل خفض الأبعاد على إسقاط هذه المساحات متعددة الأبعاد إلى مشاهد ثنائية وثلاثية الأبعاد تعكس بشكل مذهل الرسومات الأصلية لـ Waddington.
ومع ذلك، أدخلت البيانات الحديثة تعقيداً كبيراً على الصورة التقليدية. ففي حين تصور Waddington هبوطاً حتمياً أحادي الاتجاه بدرجة كبيرة تحكمه قنوات هابطة ثابتة، تُظهر القياسات التجريبية أن الحركة الخلوية عشوائية بطبيعتها. فالخلايا لا تتدحرج مجرد تدحرج عبر قنوات محدودة مسبقاً؛ بل تخضع لتقلبات عشوائية مدفوعة بالضوضاء الخلوية. وتحت ظروف بيولوجية معينة أو تدخلات تجريبية، يمكن للخلايا عبور الحواف المرتفعة التي تفصل بين الأودية، أو البقاء في حالات شبه مستقرة متوسطة، أو حتى عكس اتجاهها والتحرك نحو الأعلى باتجاه حالات شبيهة بالخلايا الجذعية أقل تمايزاً.
## لماذا يهم هذا الأمر ينطوي التحقق الكمي وتعديل نموذج المشهد التخلّقي على آثار عميقة في مجالات أحياء الخلايا الجذعية، والطب التجديدي، وعلم الأورام، والهندسة البيولوجية التخليقية. في علم أحياء التطور، يتيح امتلاك إطار رياضي دقيق لقرارات مصير الخلايا للباحثين تجاوز الوصف الكيفي نحو التنبؤات الكمية لكيفية تطور الأجنة وكيفية تنظيم الأنسجة لنفسها.
وفي الطب التجديدي، توفر القدرة على رسم خرائط التضاريس الخلوية مخططاً لإعادة برمجة الخلايا البالغة. فالعلاجات التي تهدف إلى تحويل الخلايا الجسدية — مثل الخلايا الليفية الجلدية — إلى خلايا جذعية مستحثة متعددة القدرات أو تحويلها مباشرة إلى خلايا قلبية أو عصبية وظيفية تتطلب توجيه الخلايا عبر حواجز تضاريسية مرتفعة. ويسمح فهم الارتفاع والشكل الدقيقين لحواجز الطاقة هذه لمهندسي الأحياء باختيار التدخلات الكيميائية والجينية الأمثل لخفض الحواف، مما يحسن بشكل كبير كفاءة العلاجات الخلوية وسلامتها.
وفي علم الأورام، يمكن إعادة تفسير السرطان من خلال عدسة ديناميكيات المشهد التضاريسي. وغالباً ما يتضمن التحول الخبيث هروب الخلايا من أودية أنسجتها الطبيعية عن طريق خرق الحواجز التخلّقية، مما يسمح لها بالانزلاق إلى حالات شاذة عالية التكاثر. ويوفر رسم خرائط هذه المشاهد المضطربة لأطباء الأورام أهدافاً محتملة للتدخل العلاجي، مما يتيح تصميم علاجات تهدف إلى استعادة الحواجز التضاريسية الطبيعية أو دفع خلايا السرطان إلى حالات نهائية غير قابلة للانقسام.
## الخلفية التاريخية صاغ Conrad Hal Waddington (1905–1975)، وهو عالم أحياء وفيلسوف بريطاني كان يعمل في جامعة إدنبرة، مصطلح "علم التخلّق" (epigenetics) لأول مرة في عام 1942 لوصف التفاعل المعقد بين الجينات وبيئتها الذي ينشئ النمط الظاهري. وفي كتابه البارز عام 1957 The Strategy of the Genes، نشر Waddington رسمه الأيقوني للمشهد التخلّقي، الذي رسّمه الفنان John Piper. في ذلك الوقت، كان علم الأحياء الجزيئي الحديث في بداياته؛ إذ كان James Watson وFrancis Crick قد نشرا تركيب DNA قبل أربع سنوات فقط، في عام 1953، وكان مفهوم شبكات تنظيم الجينات نظرياً بحتاً.
لعقود من الزمن، ظل رسم Waddington توضيحاً تعليمياً قوياً بدلاً من أداة عمل كمية. تطلبت الفحوصات البيولوجية التقليدية تدمير ملايين الخلايا معاً، مما أنتج لقطة متوسطة للتعبير الجيني مَحت الحالات الجزيئية المتميزة للخلايا الفردية. ونتيجة لذلك، لم يكن بمقدور العلماء تتبع المسار المستمر لخلية واحدة أثناء اتخاذها لقرارات مصيرها.
شهد نموذج المشهد التضاريسي تحولاً مفاهيمياً رئيسياً في عام 2006، عندما أظهر الباحث الياباني Shinya Yamanaka وفريقه أن إدخال أربعة عوامل نسخ فقط — عُرفت لاحقاً باسم عوامل Yamanaka — يمكن أن يعيد برمجة الخلايا الجلدية البالغة الناضجة لتعد إلى حالة الخلية الجذعية متعددة القدرات. وأثبت هذا الاكتشاف أن التمايز الخلوي ليس انزلاقاً هابطاً أحادي الاتجاه وغير قابل للعكس، مما منح Yamanaka جائزة نوبل في الطب أو الفسيولوجيا في عام 2012.
وفي الوقت نفسه، أحدث تطوير تسلسل الـ RNA للخلية الأحادية عالي الإنتاجية (scRNA-seq) في أواخر عقد 2000 وعقد 2010 ثورة في التحليل الخلوي. ومن خلال السماح للباحثين بتوصيف الترانسكريبتومات لآلاف الخلايا الفردية في تجربة واحدة، وفر scRNA-seq البيانات الخام اللازمة لبناء سطوح طاقة كامنة مدفوعة بالبيانات، محققاً رؤية Waddington من خلال الفيزياء الحوسبية الحديثة.
## ردود الفعل أثار التوليف بين الحدس التاريخي والتحليل الكمي الحديث حماساً واسع النطاق بين علماء أحياء الأنظمة والفيزيائيين الحيويين، إلى جانب نقاش حذر بشأن الحدود الرياضية. ويثمن الباحثون أن استعارة Waddington البصرية توفر جسراً حدسياً بين البيانات الجينومية المعقدة وميكانيكا التطور المفاهيمية.
ومع ذلك، ينبه الفيزيائيون النظريون وخبراء المعلوماتية الحيوية مراراً وتكراراً من أخذ التصورات التضاريسية ثلاثية الأبعاد بحرفية مفرطة. ويؤكد الخبراء أن مساحة الحالة الحقيقية للخلية توجد في مجال رياضي يمتد عبر آلاف الأبعاد المترابطة مع الجينات الفردية، والـ microRNAs، والتعديلات التخلّقية. وأدى اختزال هذه الأبعاد الهائلة إلى سطح بسيط ثلاثي الأبعاد حتماً إلى إسقاط معلومات بيولوجية حاسمة.
علاوة على ذلك، يشير كيميائيو الفيزياء إلى أن الأنظمة البيولوجية تعمل بعيداً عن التوازن الترموديناميكي. تفترض نماذج المشهد التضاريسي القياسية للطاقة في الفيزياء وجود أنظمة مغلقة في حالة توازن حراري، في حين تستهلك الخلايا الحية الطاقة باستمرار وتبدد الحرارة. ونتيجة لذلك، يناقش الباحثون العاملون في علم الأحياء الحوسبي بفاعلية كيفية تطبيق الديناميكيات الإحصائية غير التوازنية لنمذجة التحولات الخلوية بدقة دون إدخال تآلفات رياضية اصطناعية.
## ما لا نعرفه بعد لا تزال هناك فجوات تجريبية ونظرية رئيسية في ترجمة قياسات حالة الخلية إلى ديناميكيات مشهد تضاريسي دقيقة. وتتمثل إحدى القيود الرئيسية للتكنولوجيا الحالية لتسلسل الـ RNA للخلية الأحادية في أنها تتطلب تدمير الخلايا المحللة لقياس محتواها من الـ RNA. ونتيجة لذلك، تتكون مجموعات البيانات الحالية من لقطات ساكنة لخلايا فردية مختلفة تم التقاطها في نقاط زمنية متتالية، بدلاً من التتبع المستمر لخلية حية واحدة تتحرك عبر مساحة الحالة مع مرور الوقت. ويجب على الباحثين الاعتماد على خوارزميات حوسبية لإعادة بناء مسارات مستمرة افتراضية، وهي عملية تُعرف بالاستدلال الزمني الكاذب (pseudotime inference)، والتي تحمل افتراضات متأصلة.
بالإضافة إلى ذلك، لا يفهم العلماء تماماً بعد كيف تغير القوى الميكانيكية الفيزيائية، وهندسة الأنسجة، وإشارات الخلايا الديناميكية بين الخلايا، والبيئات الدقيقة للمصفوفة خارج الخلية، تضاريس المشهد في الوقت الفعلي. ولا يزال من غير الواضح ما إذا كان المشهد الأساسي يظل ثابتاً أثناء تنقل الخلايا فيه، أم أن الحركات الخلوية تعيد تشكيل المشهد نفسه ديناميكياً أثناء التخلق النسيجي.
## ما يجب مراقبته تشمل التطورات الرئيسية التي يجب مراقبتها التطور السريع لتتبع سلالات الخلايا الحية المقترن بالتصوير الخلوي الأحادي غير المدمر. وتتيح التقنيات التي تستخدم المراسلين الفلوريين، وعلامات التسجيل الجزيئي القائمة على CRISPR، والمجهر البصري عالي السرعة للباحثين بشكل متزايد تتبع الخلايا الحية الفردية في الوقت الفعلي أثناء عبورها للحالات التطويرية.
كذلك يترقب الخبراء اختراقات في الترانسكريبتوميكس المكانية والأومكس المتعددة للخلية الأحادية، والتي تقيس التعبير الجيني، وإمكانية الوصول إلى الكروماتين (عبر طرق مثل ATAC-seq)، والتوطين المكاني داخل الأنسجة السليمة بالتزامن. وسيؤدي دمج مجموعات البيانات متعددة الطبقات هذه في أطر رياضية موحدة إلى كشف كيفية إعادة السياق المكاني تشكيل التضاريس الخلوية. وفي التطبيقات السريرية، يوصى بمراقبة التقدم في منصات البرمجيات الحوسبية المصممة للتنبؤ بمسارات إعادة برمجة الخلايا للعلاجات القائمة على الخلايا وبروتوكولات الطب التجديدي.
يتضمن هذا التقرير تحليلاً يستند إلى تغطية أصلية نشرتها مجلة Quanta Magazine وكتبها الصحفي العلمي Philip Ball في 9 أكتوبر 2026.
المصدر: Philip Ball October 9