La biologie moderne de la cellule unique valide et complexifie la métaphore du paysage épigénétique de Waddington
Les récents progrès expérimentaux dans le profilage cellulaire apportent un soutien empirique au modèle conceptuel de différenciation cellulaire élaboré par C.H. Waddington dans les années 1950, tout en révélant une complexité inattendue.
The Global Wire Newsroom ·
Link preview · horizonglobalnews.com
La biologie moderne de la cellule unique valide et complexifie la métaphore du paysage épigénétique de Waddington
Les récents progrès expérimentaux dans le profilage cellulaire apportent un soutien empirique au modèle conceptuel de différenciation cellulaire élaboré par C.H. Waddington dans les années 1950, tout en révélant une complexité inattendue.
Cet article a été traduit automatiquement par l'IA de notre rédaction depuis l'original en anglais. Lire en anglais
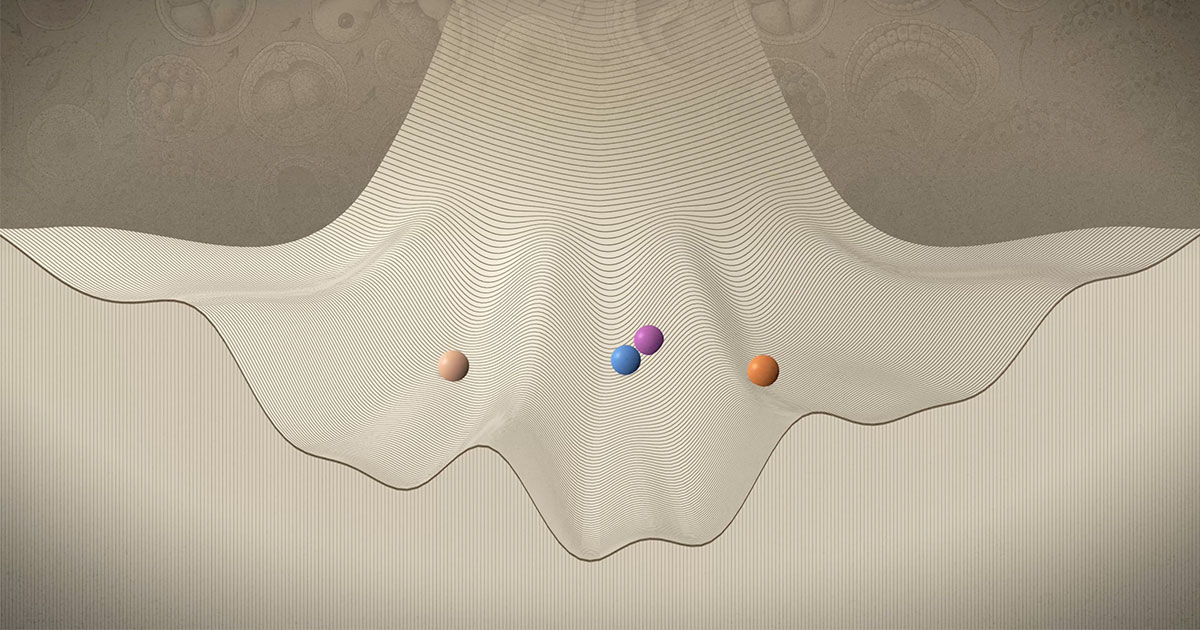
Les avancées modernes dans la technologie de la cellule unique et la modélisation mathématique sont en train de transformer l'une des métaphores les plus pérennes de la biologie en une réalité physique quantitative. Depuis plus de sept décennies, les biologistes du développement s'appuient sur un cadre conceptuel introduit par le scientifique britannique Conrad Hal Waddington : une cellule souche embryonnaire représentée sous la forme d'une bille roulant le long d'un paysage en pente et ondulé, choisissant des vallées divergentes au fur et à mesure qu'elle se spécialise en types de tissus spécifiques. Des travaux expérimentaux récents mesurent et cartographient désormais directement les propriétés mathématiques de ces terrains conceptuels, confirmant l'intuition visionnaire de Waddington tout en révélant que le développement cellulaire est nettement plus flexible et dynamique qu'imaginé à l'origine, selon les informations de Quanta Magazine.
## Faits marquants - Le biologiste britannique du développement C.H. Waddington a introduit le concept de « paysage épigénétique » au milieu du XXe siècle pour expliquer comment des cellules génétiquement identiques se différencient en types cellulaires spécialisés. - La métaphore classique dépeint une cellule comme une bille roulant le long d'une colline comportant des vallées ramifiées, où chaque trajectoire représente un destin cellulaire distinct. - Le séquençage d'ARN sur cellule unique moderne et la transcriptomique à haute dimension permettent aux scientifiques de cartographier de véritables espaces d'états génétiques qui reflètent la topographie conceptuelle de Waddington. - Des découvertes empiriques récentes démontrent que les trajectoires cellulaires sont moins rigides que ne le supposait Waddington, les cellules étant capables de franchir des crêtes topologiques ou de remonter la pente. - Selon les informations de Quanta Magazine, des chercheurs combinent la mécanique statistique hors équilibre avec le profilage génomique pour convertir la métaphore visuelle de Waddington en équations mathématiques prédictives.
## Ce qui s'est passé La transition du modèle conceptuel de Waddington vers une science empirique s'est accélérée à mesure que les outils informatiques atteignaient la résolution des instruments de laboratoire modernes. Dans la formulation originale de Waddington, la surface du paysage était imaginée comme le résultat de mécanismes génétiques plus profonds : sous le terrain vallonné, un réseau de chevilles ancrées dans le sol représentait des gènes individuels, reliés par des cordes souples tendues à la surface au-dessus. Au fur et à mesure que l'activité génique se modifiait, la tension sur les cordes déplaçait les contours des vallées et des crêtes, guidant la cellule le long de voies de développement spécifiques.
Selon les informations de Quanta Magazine, les biologistes des systèmes et les physiciens contemporains construisent désormais ces surfaces à partir de mesures directes réalisées sur des cellules vivantes. En déployant le séquençage d'ARN sur cellule unique, les chercheurs en laboratoire peuvent mesurer simultanément les niveaux d'expression de milliers de gènes au sein de cellules individuelles. Lorsque des algorithmes informatiques analysent des milliers de ces instantanés cellulaires recueillis à différents stades du développement, ils construisent des espaces d'états à haute dimension. Des techniques mathématiques telles que la réduction de dimensionnalité projettent ces espaces multidimensionnels dans des paysages en deux et trois dimensions qui reflètent de manière frappante les croquis originaux de Waddington.
Cependant, les données modernes ont également introduit une complexité significative dans ce tableau traditionnel. Là où Waddington visualisait une descente déterministe et principalement à sens unique régie par des canaux descendants fixes, les mesures empiriques montrent que le mouvement cellulaire est intrinsèquement stochastique. Les cellules ne se contentent pas de rouler le long de canaux prédéterminés ; elles subissent des fluctuations aléatoires générées par le bruit cellulaire. Dans certaines conditions biologiques ou lors d'interventions expérimentales, les cellules peuvent franchir les crêtes élevées séparant les vallées, s'attarder dans des états métastables intermédiaires, voire inverser leur direction et remonter vers des états similaires aux cellules souches, moins différenciés.
## Pourquoi c'est important La validation quantitative et l'affinage du modèle du paysage épigénétique ont des implications profondes dans la biologie des cellules souches, la médecine régénérative, l'oncologie et la bio-ingénierie synthétique. En biologie du développement, disposer d'un cadre mathématique précis pour les décisions de destin cellulaire permet aux chercheurs d'aller au-delà des descriptions qualitatives pour s'orienter vers des prédictions quantitatives du développement des embryons et de l'auto-organisation des tissus.
En médecine régénérative, la capacité de cartographier les terrains cellulaires offre un schéma directeur pour la reprogrammation des cellules adultes. Les thérapies qui visent à convertir des cellules somatiques — comme les fibroblastes cutanés — en cellules souches pluripotentes induites ou à les transdifférencier directement en cellules cardiaques ou nerveuses fonctionnelles nécessitent de guider les cellules à travers de hautes barrières topologiques. Comprendre la hauteur et la forme précises de ces barrières énergétiques permet aux bio-ingénieurs de sélectionner des interventions chimiques et génétiques optimales afin d'abaisser les crêtes, améliorant considérablement l'efficacité et la sécurité des thérapies cellulaires.
En oncologie, le cancer peut être réinterprété sous l'angle de la dynamique du paysage. La transformation maligne implique souvent que les cellules s'échappent de leurs vallées tissulaires normales en franchissant des barrières épigénétiques, ce qui leur permet de glisser vers des états aberrants et hautement prolifératifs. La cartographie de ces paysages dérégulés fournit aux oncologues des cibles potentielles d'intervention thérapeutique, permettant la conception de traitements visant à restaurer les barrières topologiques normales ou à pousser les cellules cancéreuses vers des états terminaux non diviseurs.
## Contexte Conrad Hal Waddington (1905–1975), biologiste et philosophe britannique travaillant à l'University of Edinburgh, a forgé le terme « épigénétique » en 1942 pour décrire l'interaction complexe entre les gènes et leur environnement qui donne naissance à un phénotype. Dans son livre majeur de 1957, The Strategy of the Genes, Waddington a publié son dessin emblématique du paysage épigénétique, illustré par l'artiste John Piper. À l'époque, la biologie moléculaire moderne n'en était qu'à ses balbutiements ; James Watson et Francis Crick n'avaient publié la structure de l'ADN que quatre ans auparavant, en 1953, et le concept de réseaux de régulation génique était purement théorique.
Pendant des décennies, le dessin de Waddington est resté une illustration pédagogique puissante plutôt qu'un outil de travail quantitatif. Les analyses biologiques conventionnelles nécessitaient la destruction simultanée de millions de cellules, produisant un instantané moyen de l'expression génique qui effaçait les états moléculaires distincts des cellules individuelles. Par conséquent, les scientifiques ne pouvaient pas tracer la trajectoire continue d'une cellule unique au moment où elle effectuait ses choix de destin.
Le modèle du paysage a connu un tournant conceptuel majeur en 2006, lorsque le chercheur japonais Shinya Yamanaka et son équipe ont démontré que l'introduction de seulement quatre facteurs de transcription — connus par la suite sous le nom de facteurs de Yamanaka — pouvait reprogrammer des cellules cutanées adultes matures pour les ramener à un état de cellule souche pluripotente. Cette avancée a prouvé que la différenciation cellulaire n'est pas un glissement irréversible à sens unique vers le bas, valant à Yamanaka le Nobel Prize in Physiology or Medicine en 2012.
Simultanément, le développement du séquençage d'ARN sur cellule unique à haut débit (scRNA-seq) à la fin des années 2000 et dans les années 2010 a révolutionné l'analyse cellulaire. En permettant aux chercheurs de profiler les transcriptomes de milliers de cellules individuelles en une seule expérience, le scRNA-seq a fourni les données brutes nécessaires à la construction de surfaces d'énergie potentielle guidées par les données, concrétisant la vision de Waddington grâce à la physique numérique moderne.
## Réactions La synthèse entre l'intuition historique et l'analyse quantitative moderne a suscité un vif enthousiasme parmi les biologistes des systèmes et les biophysiciens, parallèlement à un débat prudent sur les limites mathématiques. Les chercheurs apprécient le fait que la métaphore visuelle de Waddington offre une passerelle intuitive entre les données génomiques complexes et la mécanique conceptuelle du développement.
Cependant, les physiciens théoriciens et les bio-informaticiens mettent fréquemment en garde contre une interprétation trop littérale des visualisations topographiques tridimensionnelles. Les experts soulignent que le véritable espace d'états d'une cellule existe dans un domaine mathématique regroupant des milliers de dimensions correspondant aux gènes individuels, aux micro-ARN et aux modifications épigénétiques. Réduire ces dimensions massives à une simple surface en 3D écrase inévitablement des informations biologiques critiques.
En outre, les chimistes-physiciens notent que les systèmes biologiques fonctionnent loin de l'équilibre thermodynamique. Les modèles classiques de paysage énergétique en physique supposent des systèmes fermés en équilibre thermique, alors que les cellules vivantes consomment continuellement de l'énergie et dissipent de la chaleur. Par conséquent, les chercheurs travaillant en biologie numérique négocient activement la manière d'appliquer la dynamique statistique hors équilibre afin de modéliser avec précision les transitions cellulaires sans introduire d'artefacts mathématiques.
## Ce que nous ne savons pas encore De majeures lacunes empiriques et théoriques subsistent dans la traduction des mesures de l'état cellulaire en une dynamique précise du paysage. Une limite centrale de la technologie actuelle de séquençage d'ARN sur cellule unique est qu'elle nécessite la destruction des cellules analysées pour mesurer leur contenu en ARN. En conséquence, les jeux de données actuels consistent en des instantanés statiques de différentes cellules individuelles pris à des moments successifs, plutôt qu'en un suivi continu d'une cellule vivante unique se déplaçant dans l'espace d'états au fil du temps. Les chercheurs doivent s'appuyer sur des algorithmes informatiques pour reconstruire des trajectoires continues hypothétiques, un processus connu sous le nom d'inférence de pseudotemps, qui comporte des hypothèses inhérentes.
De plus, les scientifiques ne comprennent pas encore totalement comment les forces mécaniques physiques, l'architecture tissulaire, la signalisation intercellulaire dynamique et les microenvironnements de la matrice extracellulaire modifient la topographie du paysage en temps réel. Il reste à déterminer si le paysage sous-jacent demeure statique pendant que les cellules s'y déplacent, ou si les mouvements cellulaires remodèlent de manière dynamique le paysage lui-même au cours de la morphogenèse.
## À surveiller Les évolutions clés à surveiller comprennent le développement rapide du traçage du lignage sur cellules vivantes associé à l'imagerie non destructive à la cellule unique. Les techniques utilisant des rapporteurs fluorescents, des étiquettes d'enregistrement moléculaire basées sur CRISPR et la microscopie optique à haute vitesse permettent de plus en plus aux chercheurs de suivre des cellules vivantes individuelles en temps réel lorsqu'elles traversent des états de développement.
Il convient également de suivre les percées en transcriptomique spatiale et en multi-omique sur cellule unique, qui mesurent simultanément l'expression génique, l'accessibilité de la chromatine (via des méthodes telles que l'ATAC-seq) et la localisation spatiale au sein de tissus intacts. L'intégration de ces jeux de données multicouches dans des cadres mathématiques unifiés révélera comment le contexte spatial remodèle le terrain cellulaire. Dans les applications cliniques, il faudra suivre les progrès des plateformes logicielles informatiques conçues pour prédire les voies de reprogrammation cellulaire destinées aux thérapies cellulaires et aux protocoles de médecine régénérative.
Ce rapport intègre des analyses basées sur un article original publié par Quanta Magazine et rédigé par le journaliste scientifique Philip Ball le 9 octobre 2026.
Source : Philip Ball October 9