La biología unicelular moderna valida y complica la metáfora del paisaje epigenético de Waddington
Los recientes avances experimentales en el perfilado celular ofrecen respaldo empírico al modelo conceptual de diferenciación celular de C.H. Waddington de la década de 1950, al tiempo que revelan una complejidad inesperada.
The Global Wire Newsroom ·
Link preview · horizonglobalnews.com
La biología unicelular moderna valida y complica la metáfora del paisaje epigenético de Waddington
Los recientes avances experimentales en el perfilado celular ofrecen respaldo empírico al modelo conceptual de diferenciación celular de C.H. Waddington de la década de 1950, al tiempo que revelan una complejidad inesperada.
Este artículo fue traducido automáticamente por la IA de nuestra redacción desde el original en inglés. Leer en inglés
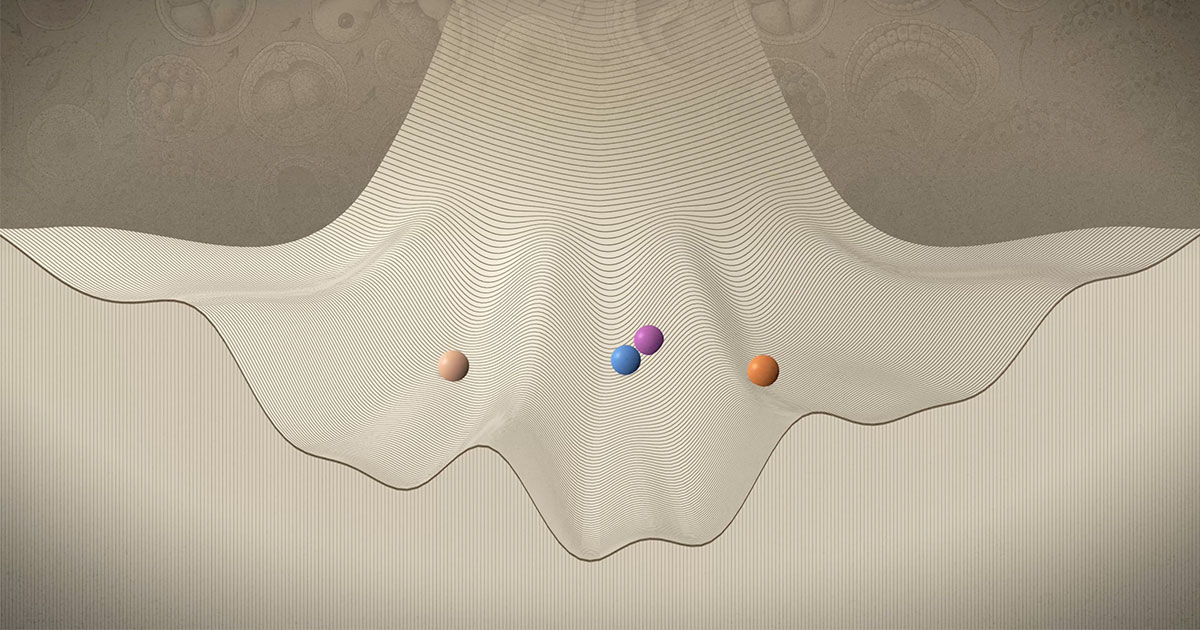
Los avances modernos en la tecnología unicelular y la modelización matemática están transformando una de las metáforas más duraderas de la ciencia biológica en una realidad física cuantitativa. Durante más de siete décadas, los biólogos del desarrollo han confiado en un marco conceptual introducido por el científico británico Conrad Hal Waddington: una célula madre embrionaria representada como una canica que rueda por un paisaje inclinado y corrugado, seleccionando valles divergentes a medida que se especializa en tipos de tejidos específicos. Los trabajos experimentales recientes están midiendo y cartografiando directamente las propiedades matemáticas de estos terrenos conceptuales, lo que confirma la intuición visionaria de Waddington al tiempo que revela que el desarrollo celular es significativamente más flexible y dinámico de lo que se concibió en un principio, según un informe de Quanta Magazine.
## Datos clave - El biólogo del desarrollo británico C.H. Waddington introdujo el concepto de "paisaje epigenético" a mediados del siglo XX para explicar cómo las células genéticamente idénticas se diferencian en tipos celulares especializados. - La metáfora clásica representa a una célula como una canica que rueda colina abajo por valles ramificados, donde cada camino representa un destino celular distinto. - La secuenciación moderna de ARN unicelular y la transcriptómica de alta dimensión permiten a los científicos cartografiar espacios reales de estados genéticos que reflejan la topografía conceptual de Waddington. - Los hallazgos empíricos recientes demuestran que las trayectorias celulares son menos rígidas de lo que Waddington asumió, y que las células son capaces de saltar crestas topológicas o volver a subir colina arriba. - Según la información de Quanta Magazine, los investigadores están combinando la mecánica estadística fuera del equilibrio con el perfilado genómico para convertir la metáfora visual de Waddington en ecuaciones matemáticas predictivas.
## Qué sucedió La transición del modelo conceptual de Waddington a la ciencia empírica se ha acelerado a medida que las herramientas computacionales alcanzan la resolución de los instrumentos de laboratorio modernos. En la formulación original de Waddington, la superficie del paisaje se imaginaba como el resultado de mecanismos genéticos más profundos: bajo el terreno ondulado, una red de estacas clavadas en el suelo representaba genes individuales, conectados mediante cuerdas flexibles tensadas con el paisaje superior. A medida que cambiaba la actividad génica, la tensión de las cuerdas alteraba los contornos de los valles y las crestas, guiando a la célula a lo largo de vías de desarrollo específicas.
Según la información de Quanta Magazine, los biólogos de sistemas y físicos contemporáneos construyen ahora estas superficies utilizando mediciones directas de células vivas. Al desplegar la secuenciación de ARN unicelular, los investigadores de laboratorio pueden medir los niveles de expresión de miles de genes en células individuales de forma simultánea. Cuando los algoritmos computacionales analizan miles de estas instantáneas celulares recopiladas en diferentes etapas del desarrollo, construyen espacios de estados de alta dimensión. Las técnicas matemáticas como la reducción de la dimensionalidad proyectan estos espacios multidimensionales en paisajes bidimensionales y tridimensionales que reflejan de forma sorprendente los bocetos originales de Waddington.
Sin embargo, los datos modernos también han introducido una complejidad significativa al panorama tradicional. Mientras que Waddington concibió un descenso en gran medida unidireccional y determinista gobernado por canales fijos ladera abajo, las mediciones empíricas muestran que el movimiento celular es inherentemente estocástico. Las células no se limitan a rodar por canales predeterminados; experimentan fluctuaciones aleatorias impulsadas por el ruido celular. Bajo ciertas condiciones biológicas o intervenciones experimentales, las células pueden cruzar las crestas elevadas que separan los valles, permanecer en estados metaestables intermedios o incluso invertir la dirección y desplazarse hacia arriba, hacia estados de tipo célula madre menos diferenciados.
## Por qué es importante La validación cuantitativa y el refinamiento del modelo de paisaje epigenético tienen profundas implicaciones en la biología de células madre, la medicina regenerativa, la oncología y la bioingeniería sintética. En biología del desarrollo, contar con un marco matemático preciso para las decisiones sobre el destino celular permite a los investigadores ir más allá de las descripciones cualitativas y avanzar hacia predicciones cuantitativas de cómo se desarrollan los embriones y cómo se autoorganizan los tejidos.
En medicina regenerativa, la capacidad de cartografiar terrenos celulares ofrece un diseño detallado para reprogramar células adultas. Las terapias que pretenden convertir células somáticas —como los fibroblastos de la piel— en células madre pluripotentes inducidas o transdiferenciarlas directamente en células cardíacas o neuronales funcionales requieren guiar a las células a través de elevadas barreras topológicas. Comprender la altura y la forma precisas de estas barreras de energía permite a los bioingenieros seleccionar intervenciones químicas y genéticas óptimas para rebajar las crestas, mejorando drásticamente la eficiencia y la seguridad de las terapias celulares.
En oncología, el cáncer puede reinterpretarse a través del prisma de la dinámica del paisaje. La transformación maligna implica a menudo que las células escapen de sus valles tisulares normales rompiendo las barreras epigenéticas, lo que les permite deslizarse hacia estados aberrantes y altamente proliferativos. Cartografiar estos paisajes desregulados ofrece a los oncólogos posibles dianas para la intervención terapéutica, permitiendo el diseño de tratamientos destinados a restaurar las barreras topológicas normales o a empujar a las células cancerosas hacia estados terminales y sin división.
## Antecedentes Conrad Hal Waddington (1905–1975), biólogo y filósofo británico que trabajaba en la Universidad de Edimburgo, acuñó por primera vez el término "epigenética" en 1942 para describir la compleja interacción entre los genes y su entorno que da lugar a un fenotipo. En su monumental libro de 1957 The Strategy of the Genes, Waddington publicó su icónico dibujo del paisaje epigenético, ilustrado por el artista John Piper. En aquel momento, la biología molecular moderna estaba dando sus primeros pasos; James Watson y Francis Crick habían publicado la estructura del ADN solo cuatro años antes, en 1953, y el concepto de redes de regulación génica era puramente teórico.
Durante décadas, el dibujo de Waddington siguió siendo una poderosa ilustración educativa más que una herramienta de trabajo cuantitativa. Los ensayos biológicos convencionales requerían destruir millones de células juntas, produciendo una instantánea promediada de la expresión génica que borraba los estados moleculares distintos de las células individuales. En consecuencia, los científicos no podían rastrear el camino continuo de una sola célula a medida que tomaba decisiones sobre su destino.
El modelo del paisaje experimentó un cambio conceptual de gran calado en 2006, cuando el investigador japonés Shinya Yamanaka y su equipo demostraron que la introducción de tan solo cuatro factores de transcripción —conocidos posteriormente como los factores de Yamanaka— podía reprogramar células maduras de la piel adulta para devolverlas a un estado de célula madre pluripotente. Este avance demostró que la diferenciación celular no es un descenso irreversible de sentido único, lo que le valió a Yamanaka el Premio Nobel de Fisiología o Medicina en 2012.
Simultáneamente, el desarrollo de la secuenciación de ARN unicelular de alto rendimiento (scRNA-seq) a finales de la década de 2000 y en la de 2010 revolucionó el análisis celular. Al permitir a los investigadores perfilar los transcriptomas de miles de células individuales en un solo experimento, la scRNA-seq proporcionó los datos brutos necesarios para construir superficies de energía potencial basadas en datos, cumpliendo la visión de Waddington a través de la física computacional moderna.
## Reacciones La síntesis entre la intuición histórica y el análisis cuantitativo moderno ha generado un gran entusiasmo entre los biólogos de sistemas y los biofísicos, junto con un debate cauto respecto a los límites matemáticos. Los investigadores valoran que la metáfora visual de Waddington ofrezca un puente intuitivo entre los complejos datos genómicos y la mecánica conceptual del desarrollo.
Sin embargo, los físicos teóricos y los bioinformáticos advierten con frecuencia del peligro de tomarse las visualizaciones topográficas tridimensionales demasiado al pie de la letra. Los expertos enfatizan que el verdadero espacio de estados de una célula existe en un reino matemático que abarca miles de dimensiones correspondientes a genes individuales, microARN y modificaciones epigenéticas. Reducir estas enormes dimensiones a una simple superficie en 3D destruye de forma inevitable información biológica crítica.
Además, los fisicoquímicos señalan que los sistemas biológicos operan muy lejos del equilibrio termodinámico. Los modelos estándar de paisajes energéticos en física presuponen sistemas cerrados en equilibrio térmico, mientras que las células vivas consumen energía y disipan calor de forma continua. En consecuencia, los investigadores que trabajan en biología computacional están debatiendo activamente cómo aplicar la dinámica estadística fuera del equilibrio para modelar con precisión las transiciones celulares sin introducir artefactos matemáticos.
## Lo que aún no sabemos Aún existen importantes lagunas empíricas y teóricas a la hora de traducir las mediciones del estado celular en una dinámica de paisaje precisa. Una limitación central de la tecnología actual de secuenciación de ARN unicelular es que requiere destruir las células analizadas para medir su contenido de ARN. Como resultado, los conjuntos de datos actuales consisten en instantáneas estáticas de diferentes células individuales tomadas en momentos sucesivos, en lugar del seguimiento continuo de una sola célula viva que se desplaza por el espacio de estados a lo largo del tiempo. Los investigadores deben confiar en algoritmos computacionales para reconstruir trayectorias continuas hipotéticas, un proceso conocido como inferencia de pseudotiempo, que conlleva suposiciones inherentes.
Además, los científicos aún no comprenden del todo cómo las fuerzas mecánicas físicas, la arquitectura tisular, la señalización dinámica de célula a célula y los microentornos de la matriz extracelular alteran la topografía del paisaje en tiempo real. Sigue sin estar claro si el paisaje subyacente permanece estático mientras las células lo navegan, o si los movimientos celulares remodelan dinámicamente el propio paisaje durante la morfogénesis.
## A qué estar atentos Entre los desarrollos clave que habrá que seguir de cerca se encuentra la rápida evolución del rastreo del linaje en células vivas combinado con la imagen unicelular no destructiva. Las técnicas que utilizan marcadores fluorescentes, etiquetas de registro molecular basadas en CRISPR y microscopía óptica de alta velocidad permiten cada vez más a los investigadores seguir células vivas individuales en tiempo real a medida que atraviesan diferentes estados de desarrollo.
Habrá que estar atentos también a los avances en transcriptómica espacial y multiómica unicelular, que miden simultáneamente la expresión génica, la accesibilidad de la cromatina (a través de métodos como ATAC-seq) y la localización espacial dentro de tejidos intactos. La integración de estos conjuntos de datos de múltiples capas en marcos matemáticos unificados revelará cómo el contexto espacial remodela el terreno celular. En las aplicaciones clínicas, convendrá seguir el progreso de las plataformas de software computacional diseñadas para predecir las rutas de reprogramación celular en terapias basadas en células y protocolos de medicina regenerativa.
Este informe incorpora análisis basados en la información original publicada por Quanta Magazine y redactada por el periodista científico Philip Ball el 9 de octubre de 2026.
Fuente: Philip Ball October 9